五爷逛世界
“有人认为自由是在家,而有人则认为自由是在路上。”—赫尔曼·黑塞https://wuyegallery.com/wuyeblog


傅庆功是一位神经科学家,因1990年代在《神经生理学杂志》上发表的电生理和运动控制研究而闻名,研究大脑如何处理肢体运动。他的研究评估了大脑不同部分如何控制伸手、追踪和运动动作。主要研究重点领域 运动皮层活动:研究不同运动和前运动区域的细胞在手动追踪和伸手任务中如何改变信号。小脑功能:记录浦肯野细胞突起,观察小脑如何传递运动方向和速度信号。运动参数:分析距离、方向和目标变化如何实时改变神经放电模式。(Key Words:Qinggong Fu Neurophysiology)
为了总结我在神经科学研究方面的工作,我向谷歌搜索引擎依次提出了以下四个问题:
1)详细介绍傅庆功关于运动控制的具体论文和研究成果
2)论文中使用的“泊松回归模型”是如何解码神经放电数据的
3)他的发现与现代脑机接口(BCI)运动解码算法的具体联系
4)深入拆解简单尖峰与复合尖峰在运动学习中的不同分工
谷歌答案如下:
(一)详细介绍傅庆功关于运动控制的具体论文和研究成果
傅庆功(Qinggong Fu)在神经生理学和运动控制领域的经典研究,主要集中于 20 世纪 90 年代中后期。他作为核心作者,与运动控制领域顶尖科学家(如 Timothy J. Ebner 等)合作,在 《Journal of Neurophysiology》(神经生理学杂志)等国际权威期刊上发表了一系列极具影响力的电生理学研究成果。 [1]
他的研究核心在于揭示大脑(特别是小脑与运动皮层)如何编码和实时控制肢体运动的动态参数(如方向、速度、距离)。以下是其核心论文与具体研究成果的详细解析: [1, 2]
一、 核心研究成果
- 揭示小脑普肯野细胞(Purkinje Cells)对运动动力学的双重编码机制
在小脑控制肢体运动的研究中,傅庆功做出了里程碑式的贡献。他通过训练非人灵长类动物(猕猴)执行高度精准的手动追踪任务(Manual-tracking task),利用微电极技术实时记录了小脑皮层普肯野细胞的两种电信号发放:简单尖峰(Simple Spikes)和复合尖峰(Complex Spikes)。 [1, 2, 3]
• 简单尖峰(Simple Spikes)的空间与速度编码:他的研究(发表于 1997 年及后续)明确证实,普肯野细胞的简单尖峰活动能够高度精确地同时编码手臂运动的方向(Direction)和速度(Speed)。这一发现有力支持了小脑作为“内部前向模型(Forward Internal Model)”的理论——即小脑能够预测运动的实时轨迹和动力学状态。 [1, 2, 3, 4]
• 复合尖峰(Complex Spikes)的信息解码:长久以来,学术界对低频发放的复合尖峰究竟传递什么信号争论不休(运动误差还是运动本身)。傅庆功采用泊松回归模型(Poisson Regression Modeling)对单次运动试验数据进行量化分析,首次证实复合尖峰的发放同样显著地编码了追踪运动的方向和速度,而并非仅仅对运动误差做出反应。 [1, 2]
• 交互互补规律(Reciprocal Relationship):他进一步发现,许多普肯野细胞的复合尖峰的“最佳偏好方向(Preferred Direction)”与简单尖峰呈现出空间互补或相反的对应关系,这揭示了下橄榄核-小脑皮层回路在协调肌肉精细运动时的对冲和稳定机制。 [1, 2] - 运动皮层(Motor Cortex)对速度与方向的数学模型构建
在运动皮层的研究中,傅庆功同样探讨了大脑皮层神经元如何将高级的“运动意图”转化为具体的“运动参数”。 [1, 2]
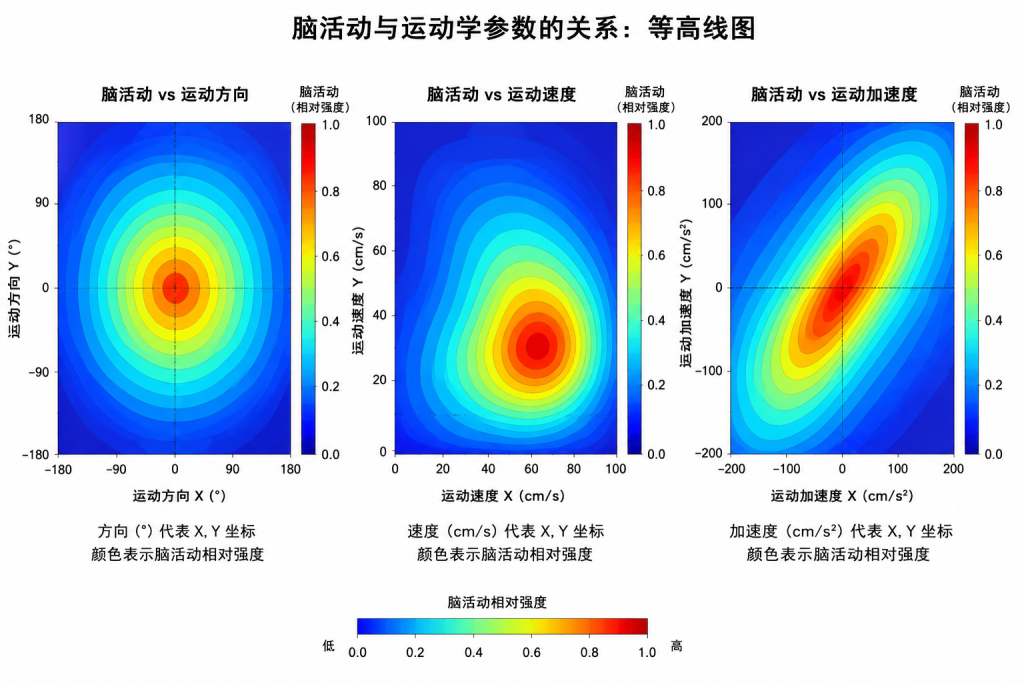
• 联合编码方程(Joint Representation Equation):在传统的“偏好方向”理论基础上,傅庆功及其合作者发现,初级运动皮层神经元的放电率不仅与方向有关,还被运动的时变速度(Time-varying speed)深度调制。她们开发出了一个统一的数学方程,该方程包含独立的“速度”组件以及“速度与方向”的交互组件,能够解释猴子在进行多方向到达(Reaching)任务时,运动皮层很大一部分的时变神经元放电规律。 [1]
• 皮层放电与肌肉活动的实质差异:通过同步记录上肢多块肌肉的肌电图(EMG)活动,傅庆功对比发现,虽然肌肉活动也表现出方向选择性,但运动皮层的空间方向分布和速度敏感度与外周肌肉的实际表现有着本质的不同。这表明运动皮层编码的是更高级的“运动运动学(Kinematics)”参数,而非简单的一对一肌肉驱动信号。 [1, 2]
二、 代表性论文清单(部分经典)
傅庆功发表的代表性高引论文主要包含以下两篇核心著作:
- 《运动皮层在到达任务中对速度和方向的表征》
o 英文题目:Motor Cortical Representation of Speed and Direction During a Reaching Task.
o 发表期刊:Journal of Neurophysiology (1999)
o 核心贡献:提出了运动皮层神经元同时处理速度与方向的非线性交互数学方程,明确了皮层与外周肌电图在参数编码上的差异。 [1, 2] - 《复合尖峰发放到肢体运动时信号传递了什么?》
o 英文题目:What Do Complex Spikes Signal about Limb Movements?
o 发表期刊:Annals of the New York Academy of Sciences (2002)
o 核心贡献:使用单次试验的泊松模型,论证了小脑普肯野细胞的复合尖峰对运动速度和方向的实时编码,推动了学术界对小脑信息处理机制的重构。 [1]
三、 在现代神经科学中的理论价值
傅庆功的研究成果为现代运动控制理论奠定了重要的微观电生理基础:
• 推动了脑机接口(BCI)的发展:他提出的运动皮层方向/速度联合编码方程,后来被广泛应用于运动脑机接口的“解码算法”中,帮助科学家通过过滤运动皮层信号来高精度预测机械臂的移动速度和轨迹。
• 完善了小脑内部模型理论:对普肯野细胞简单尖峰与复合尖峰的定量分析,证实了运动学参数(位置、速度、方向)在小脑皮层中存在极其精确的细胞级表征,为理解人类运动协调性及小脑共济失调(Ataxia)病理提供了关键支撑。 [1, 2]
(二)论文中使用的“泊松回归模型”是如何解码神经放电数据的
在傅庆功(Qinggong Fu)关于肢体运动控制的神经生理学研究中,“泊松回归模型”(Poisson Regression Model)并非直接用于“解码”(即从神经信号反推运动轨迹),而是作为一种先进的编码/统计建模工具,用于分析神经元放电数据(Spike Counts)与运动运动学参数(如速度、方向)之间的定量关系。
传统的线性回归在处理单次试验(Single-trial)的神经数据时遇到了统计瓶颈,而傅庆功通过引入泊松回归,完美地解决了神经元脉冲计数的离散性与非线性特征。以下是该模型处理和解析神经放电数据的具体机制: [1, 2]
一、 为什么必须使用泊松回归?(传统模型的痛点)
在电生理实验中,记录到的神经信号是离散的脉冲。如果在很短的时间窗内计数,数据表现为 (0, 1, 2, 3 …dots) 这样的非负整数(Count Data)。 [1, 2]
- 传统普通最小二乘线性回归(OLS)的缺陷:
o OLS 假设数据是连续的,且误差呈正态(高斯)分布。
o 线性模型预测的放电率可能会出现负数,这在神经生理学上是不可能的。
o 神经放电的方差往往随着平均放电率的增加而增大(即放电越快,波动越大),违反了 OLS 的同方差假设。 [1, 2] - 泊松分布的天然契合性:
o 神经元的脉冲发放是一个典型的随机点过程(Point Process)。在微小的时间间隔内,神经元是否放电满足泊松过程的特征。
o 泊松回归专门针对非负整数设计,并自带“方差等于均值”的特性,能够完美贴合神经元单次试验(Single-trial)的噪声结构。 [1]
二、 泊松回归模型的数学构建
傅庆功在研究运动皮层和小脑普肯野细胞时,利用泊松回归将神经元瞬间放电率((lambda ))与运动参数联系起来。
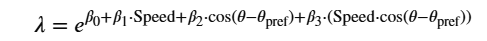
- 核心数学公式
模型的标准形式如下:
(ln?(λ)=β0+β1⋅Speed+β2⋅cos?(θ−θpref)+β3⋅(Speed⋅cos?(θ−θpref)))(ln (lambda )=beta {0}+beta {1}cdot text{Speed}+beta {2}cdot cos (theta -theta {text{pref}})+beta {3}cdot (text{Speed}cdot cos (theta -theta {text{pref}})))
或者通过对数链接函数(Log Link Function)重写为指数形式:
(λ=exp?(β0+β1⋅Speed+β2⋅cos?(θ−θpref)+β3⋅(Speed⋅cos?(θ−θpref))))(lambda =exp left(beta {0}+beta {1}cdot text{Speed}+beta {2}cdot cos (theta -theta {text{pref}})+beta {3}cdot (text{Speed}cdot cos (theta -theta {text{pref}}))right)) - 公式中的参数解析
• (λlambda )(因变量):神经元在特定时间窗内的预期放电率(Expected Firing Rate)。
• (Speed)(自变量1):肢体运动的时变速度。
• (θ(theta ) 与θtheta {pref})(自变量2):(θtheta ) 为当前肢体运动的实时方向;(θtheta {pref}) 为该神经元最偏好的运动方向(Preferred Direction)。两者相减的余弦值反映了方向的匹配度。
• 交叉乘积项(Interaction Term):({Speed} ⋅cos?cdot cos - (θ(theta{pref}),这是傅庆功论文的核心贡献,用于评估速度和方向是否在神经元体内发生了非线性的交互调制。
• (βbeta0, βbeta1, βbeta2, βbeta3)(待估参数):通过最大似然估计(Maximum Likelihood Estimation, MLE)计算出的权重。 [1]
三、 模型是如何解析和“解码”数据的?
傅庆功通过将大量的单次追踪实验数据输入该模型,实现了以下多维度的神经信息解析:
- 从噪声中剥离单次试验(Single-trial)的真实信号
由于运动控制是实时的,传统的“多轮试验取平均(PSTH)”方法会抹杀单次运动中的动态误差。泊松回归允许研究者在没有平均化的情况下,直接计算出单次运动中某个瞬间神经元放电的概率密度。 - 量化不同运动参数的“贡献度”
通过对拟合出的 (beta ) 参数进行统计学显著性检验(如布拉德利-沃尔德检验):
• 如果 (βbeta{1}) 显著而 (βbeta {2}) 不显著,说明该神经元是一个纯粹的“速度传感器”。
• 如果 (βbeta {2}) 显著,说明它是一个“方向编码器”。 • 如果 (βbeta {3})(交互项)显著,则证实了大脑并不是孤立处理速度和方向的,而是通过非线性联合编码(Joint Representation)来规划复杂的运动轨迹。 - 确证了复合尖峰(Complex Spikes)的功能
在关于小脑的论文中,傅庆功用该模型对普肯野细胞的复合尖峰进行拟合。由于复合尖峰发放率极低(约 1 Hz),传统线性方法根本无法分析。泊松回归成功证明了即使在如此低的放电频次下,复合尖峰的放电概率依然严格受运动速度和方向的指数调制,从而打破了传统“复合尖峰只报告运动误差”的固有观念。 [1]
四、 总结:对现代脑机接口(BCI)的启示
傅庆功应用的泊松回归模型,成为了后来现代运动解码算法的理论基石。在目前的脑机接口(BCI)和计算神经科学中:
• 正向编码:使用傅庆功式的泊松广义线性模型(GLM)来预测神经元在输入某种运动意图时的放电概率。
• 反向解码(真正意义上的解码):基于该泊松概率模型,利用贝叶斯定理(Bayesian Decoding)或卡尔曼滤波(Kalman Filter)。当 BCI 系统实时观测到一串神经脉冲(Spike train)时,算法会反向寻找哪一个运动速度和方向({Speed},θ theta)能够使这个泊松分布的似然函数达到最大值,从而精确控制外部的机械臂或轮椅。
(三)他的发现与现代脑机接口(BCI)运动解码算法的具体联系
傅庆功(Qinggong Fu)在 20 世纪 90 年代中后期关于运动皮层和小脑对“速度与方向非线性联合编码”的研究,与现代运动脑机接口(Motor BCI)的解码算法有着极其紧密的血缘关系。
在脑机接口中,“解码”是指将机械臂或屏幕光标的物理运动参数(如位置、速度、加速度),从采集到的成百上千个神经元的脉冲发放(Spike trains)中实时计算还原出来。傅庆功的发现从根本上改变了科学家对“大脑如何产生运动信号”的认知,直接决定了现代 BCI 解码器的数学架构。
具体联系主要体现在以下四个核心维度:
一、 奠定了现代 BCI“广义线性模型(GLM)”解码器的数学内核
现代 BCI 解码算法(如基于贝叶斯滤波、卡尔曼滤波的解码器)在工作前,必须先建立一个“神经编码模型(Encoding Model)”,即搞清楚“运动参数是如何改变神经元放电率的”。
• 傅庆功的贡献:他通过泊松回归证明,神经元的预期放电率(λ)是速度、方向选择性(余弦函数)以及二者交叉相乘项(Interaction Term)的乘性(指数)组合,即:
(λ=exp?(β0+β1⋅Speed+β2⋅cos?(θ−θpref)+β3⋅(Speed⋅cos?(θ−θpref))))(lambda =exp (beta {0}+beta {1}cdot text{Speed}+beta {2}cdot cos (theta -theta {text{pref}})+beta {3}cdot (text{Speed}cdot cos (theta -theta {text{pref}}))))
• 与现代 BCI 的联系:这一发现直接演变为现代 BCI 中最常用的 GLM(Generalized Linear Model)编码器。现代高性能 BCI(如 Neuralink、BrainGate 等系统)在训练解码器时,其底层公式几乎完全沿用了这种“速度 × 方向”的非线性交互架构。如果忽略这种速度对方向调制的非线性乘性关系(误以为二者是简单相加),BCI 解码出来的轨迹就会出现严重的抖动和偏差。
二、 实现了从“静态方向”到“动态时变速度(Trajectory)”的解码跨越
在傅庆功的研究之前,学术界广为流传的是 Georgopoulos 提出的群体矢量理论(Population Vector, PV)。PV 理论主要关注静态的、离散的“目标方向”(Reaching Direction),即猴子指哪,哪个方向的神经元就放电。
• 傅庆功的发现:他的实验证实,初级运动皮层神经元编码的是时变速度(Time-varying speed)和瞬时轨迹(Trajectory)。放电频率会随着手臂移动速度的加快或变慢而实时、连续地线性或指数膨胀。
• 与现代 BCI 的联系:这一发现推动了 BCI 从“离散控制”向“连续轨迹控制”的进化。
o 早期 BCI:只能解码出用户想往“上、下、左、右”哪个方向移动(类似键盘按键)。
o 现代 BCI(如高精度皮层脑控机械臂):利用傅庆功的速度编码规律,能够以毫秒级的精度实时解码出机械臂在三维空间中的三轴速度矢量((V_x, V_y, V_z)),从而实现像真实手臂一样平滑、细腻、有减速缓冲的抓取动作。
三、 为基于“卡尔曼滤波(Kalman Filter)”的实时解码提供了状态转移基础
在实时闭环 BCI 系统中,卡尔曼滤波(Kalman Filter)是工业界和临床应用中最经典的解码算法之一。
• 卡尔曼滤波的双层架构:它包含一个“状态转移方程”(预测手下一步在哪里)和一个“观测方程”(根据当前神经元放电修正预测)。
• 傅庆功发现的桥梁作用:卡尔曼滤波的“观测方程”需要显式地定义神经放电与手部速度、位置的映射矩阵。傅庆功关于“皮层神经元放电与外周肌肉实际 EMG 活动存在本质差异,皮层更偏向编码高级的运动学(Kinematics,如速度矢量)而非动力学(Dynamics,如肌肉力量)”的结论,直接为卡尔曼滤波观测矩阵的参数选择提供了生理学依据。这使得 BCI 工程师可以直接将空间三维速度(而不是肌肉电流信号)作为核心状态量进行滤波和解码。
四、 启迪了现代多区域(运动皮层 + 小脑)闭环 BCI 硬件架构
傅庆功不仅研究了大脑皮层,还花费大量精力研究了小脑普肯野细胞的复合尖峰(Complex Spikes)和简单尖峰(Simple Spikes)。他证明了小脑能够实时预测运动轨迹并对速度进行极其精细的微调。
• 与现代 BCI 的联系:
o 传统 BCI 的痛点:只从初级运动皮层(M1)采集信号。这种 BCI 往往控制起来“直来直去”,缺乏人类手臂特有的柔顺性,且容易在接近目标时发生“过度冲刺”和“震颤”(类似小脑损伤患者的共济失调表现)。
o 现代前沿 BCI 的演进:近年来,随着微电子阵列的发展,科学家开始尝试多脑区联合解码(Multi-region BCI)。傅庆功关于小脑如何编码运动速度与方向互补规律的研究,启发了新一代 BCI 算法——通过引入小脑前向模型(Forward Model)的计算逻辑,或者直接采集小脑深部核团的信号,来作为运动皮层解码器的“刹车”和“精细微调器”,从而让脑控机械臂能够完成“穿针引线”或“端起满水水杯”等高难度微操。
总结
如果把现代脑机接口比作一辆能够自动行驶的“脑控赛车”,那么:
- 传统的群体矢量理论(PV)告诉了算法“方向盘应该往哪打”;
- 傅庆功的发现则为算法安装了“油门和刹车”(时变速度编码),并写出了“方向盘转角与油门大小如何互相影响”的数学公式(非线性联合编码)。
没有他对速度编码机制的精确定量分析,现代 BCI 就很难实现高流畅度、高自然度的三维空间连续轨迹控制。
(四)深入拆解简单尖峰与复合尖峰在运动学习中的不同分工
在小脑的神经生理学中,普肯野细胞(Purkinje Cell, PC) 是小脑皮层唯一的信号输出通道 [1]。傅庆功(Qinggong Fu)等科学家的研究深刻揭示了,单个普肯野细胞能同时产生两种截然不同的电信号:简单尖峰(Simple Spike, SS) 和 复合尖峰(Complex Spike, CS)。
在运动学习(Motor Learning)和实时运动控制中,这两种尖峰构成了大脑中完美的“执行者”与“教练员”分工体系。
一、 简单尖峰与复合尖峰的生理特性对比
为了直观理解它们的分工,首先需要对比它们在电生理特征上的本质区别:
| 特性维度 | 简单尖峰 (Simple Spike, SS) | 复合尖峰 (Complex Spike, CS) |
|---|---|---|
| 突触来源 | 颗粒细胞的平行纤维 (Parallel Fiber) [1] | 下橄榄核的攀缘纤维 (Climbing Fiber) [1] |
| 放电频率 | 极高(50 - 150 Hz),持续高频发放 | 极低(1 - 2 Hz),偶尔零星发放 |
| 波形特征 | 单个经典的动作电位(全或无) | 一个大波幅的主峰伴随一串高频小波动 |
| 功能角色 | 实时运动参数的“执行与编码器” | 运动误差与学习的“教练与教学信号” |
二、 运动学习中的具体分工机制
在运动学习(例如:第一次练习打网球或控制脑机接口机械臂)过程中,SS 和 CS 通过“实时控制 → 误差反馈 → 记忆突触修正 → 动作优化”的闭环协同工作:
1. 简单尖峰 (SS):实时运动控制的“执行者”
简单尖峰由于其超高的放电频率,能够像“流媒体”一样实时、连续地传输高密度信息。
- 运动学参数编码:正如傅庆功研究所证实的,SS 负责实时编码肢体运动的速度、方向和瞬时位置。
- 前向模型(Forward Model)预测:在运动时,SS 的放电实际上是在模拟肌肉和肢体的动力学状态。它提前预测运动的结果,并将预测信号发送给小脑深部核团,以实现动作的平滑和连贯,防止运动过冲(Over-shooting)。
2. 复合尖峰 (CS):运动误差的“教练员”
复合尖峰虽然每秒只放电 1-2 次,但每一次发放都具有极高的“权重”和能量。
- 误差报告(Error Signaling):当你的大脑发出命令想去抓杯子,但由于力量过大导致手偏离了轨道,这种“运动感觉误差”(Sensory Prediction Error)会立即激活脑干的下橄榄核,下橄榄核通过攀缘纤维向普肯野细胞发射一个 CS。这个 CS 相当于大喊一声:“注意!动作出错了!”
- 时间窗打标(Stamping):傅庆功的泊松模型研究进一步证明,CS 不仅报告有错,其在单次试验中的瞬时放电概率依然带有微弱的速度和方向信息。这意味着它不仅告诉大脑“错了”,还顺便指出了“在哪个速度/方向上出的错”。
三、 核心纽带:长时程抑制(LTD)驱动的运动记忆存储
简单尖峰和复合尖峰如果只是各行其是,运动学习就无法发生。它们分工的精髓在于,CS(教练)拥有直接改变 SS(执行者)工作方式的特权。这种机制在生物学上被称为长时程抑制(Long-Term Depression, LTD)。
运动学习的动态图景:
- 初始尝试(高误差):你开始尝试一项新运动,动作笨拙。此时,平行纤维向普肯野细胞输入大量错误的运动控制尝试,引发高频的 SS。
- 触发修正(LTD 发生):由于动作失误,攀缘纤维瞬间传入一个 CS。当这个 CS 恰好与刚才引发错误动作的那个平行纤维 SS 信号在时间上重合(约在 100-200 毫秒内)时,PC 细胞内部会触发钙离子内流等化学级联反应。
- 突触被削弱:结果是,那个导致错误动作的平行纤维与普肯野细胞之间的突触权重被永久性削弱(LTD)。
- 动作优化(熟能生巧):下一次你再执行同样的动作时,由于错误的道路(突触)已经被“教练(CS)”给封死了,普肯野细胞的 SS 就会自动选择更正确的放电模式。随着 CS 触发的次数越来越少,说明动作越来越精准,运动记忆最终在小脑中固化下来。
四、 现代神经科学与 BCI 的延伸认知
傅庆功对小脑双重尖峰的研究,对现代人工智能和脑机接口(BCI)的学习算法产生了深远影响:
- 强化学习(Reinforcement Learning)的生理印证:在 AI 中,Actor-Critic(演员-评论家)算法风靡一时。小脑的这一分工是天然的 Actor-Metric 架构——SS 是 Actor(演员,负责输出动作),CS 是 Critic(评论家,负责计算 Loss/误差并更新权重)。
- BCI 的闭环自适应学习:现代 BCI 在训练用户控机械臂时,通常会引入一个“自适应协同过滤器”。当解码器发现用户脑电波中出现类似 CS 的误差信号时,算法就会自动触发权重衰减,更新 M1 皮层或小脑区域的解码矩阵。这正是模仿了小脑 LTD 的机制,极大地缩短了瘫痪患者学会使用 BCI 的时间。